Artículo técnico · Nutrición y salud intestinal en avicultura y porcicultura
Durante décadas, la fibra dietética fue tratada en la formulación de monogástricos como un componente de relleno, e incluso como un factor antinutricional que diluía la energía de la dieta y comprometía la digestibilidad. Hoy, el avance en el conocimiento del microbioma intestinal ha invertido por completo esa visión. La fracción fibrosa del alimento ha pasado de ser un lastre a convertirse en un sustrato estratégico: el combustible que alimenta a una comunidad microbiana capaz de modular la salud intestinal, la inmunidad y la eficiencia productiva del animal. Este artículo revisa los fundamentos científicos de ese cambio de paradigma y las herramientas nutricionales que permiten capitalizarlo.
De antinutriente a recurso: el nuevo papel de la fibra
La fibra dietética está compuesta mayoritariamente por polisacáridos no amiláceos (PNA), un grupo heterogéneo que incluye arabinoxilanos, β-glucanos, celulosa, pectinas y oligosacáridos asociados a la pared celular vegetal. A diferencia del almidón, estos compuestos no pueden ser hidrolizados por las enzimas digestivas endógenas del animal monogástrico, por lo que durante mucho tiempo se consideraron simplemente indigestibles.
El problema clásico, especialmente en dietas a base de trigo, cebada o centeno, es que los PNA solubles incrementan la viscosidad de la digesta. Esa mayor viscosidad reduce la velocidad de difusión de enzimas y nutrientes, deteriora la absorción de grasas y aminoácidos y altera la dinámica de la microbiota, fenómenos ampliamente documentados en la literatura avícola [1]. De ahí que las primeras estrategias se centraran en eliminar el efecto negativo de la fibra mediante enzimas exógenas, más que en aprovecharla.
Sin embargo, la fibra también posee una fracción fermentable de enorme valor biológico. Los polisacáridos no amiláceos y los oligosacáridos que de ellos derivan constituyen los sustratos preferenciales de la microbiota fermentativa del intestino grueso y los ciegos. Comprender esta dualidad —antinutriente viscoso por un lado, prebiótico fermentable por otro— es la base de la nutrición de precisión moderna en monogástricos [2].
El microbioma intestinal como órgano metabólico
El tracto digestivo de las aves y los cerdos alberga una comunidad microbiana compleja —dominada por los filos Firmicutes y Bacteroidetes— que cumple funciones que el propio hospedador no puede realizar. En el ave, la fermentación de la fibra ocurre principalmente en los ciegos, donde residen las poblaciones bacterianas de mayor densidad y diversidad [2]. Estas bacterias actúan, en conjunto, como un verdadero órgano metabólico adicional.
Un microbioma equilibrado aporta beneficios concretos: compite por nicho y nutrientes frente a patógenos (exclusión competitiva), refuerza la barrera de mucus y las uniones estrechas del epitelio, estimula el tejido linfoide asociado al intestino y participa en la maduración inmunológica del animal. La fibra fermentable es, precisamente, la palanca nutricional más directa para orientar esa comunidad hacia un perfil benéfico y estable [3].
El equilibrio entre eubiosis (microbiota sana y diversa) y disbiosis (desequilibrio con predominio de poblaciones indeseables) es dinámico y depende en gran medida de los sustratos disponibles. Cuando la fracción fibrosa no se fermenta de forma adecuada, llega proteína no digerida al intestino posterior y la fermentación se desvía hacia rutas proteolíticas, que generan compuestos potencialmente tóxicos —amoníaco, aminas y ácidos grasos de cadena ramificada— y favorecen a patógenos oportunistas. Por el contrario, una fermentación sacarolítica robusta, sostenida por fibra fermentable y oligosacáridos, acidifica el medio, desplaza el equilibrio hacia bacterias productoras de butirato y reduce la presión de enfermedades entéricas como la enteritis necrótica. Gestionar la fibra es, en última instancia, gestionar la dirección de la fermentación.
Los ácidos grasos de cadena corta: la moneda de la fermentación
El producto final más relevante de la fermentación de la fibra son los ácidos grasos de cadena corta (AGCC), principalmente acetato, propionato y butirato. Estos metabolitos son mucho más que un subproducto: representan la moneda con la que la microbiota retribuye al hospedador [3]. El acetato y el propionato se absorben y participan en el metabolismo energético y lipídico sistémico; el butirato, en cambio, es la fuente energética preferente de los colonocitos y enterocitos del intestino posterior.
El butirato merece atención especial. Además de nutrir directamente al epitelio, regula la proliferación y diferenciación celular, refuerza las proteínas de unión estrecha que sellan la barrera intestinal, ejerce efectos antiinflamatorios y contribuye a un pH luminal que desfavorece a enterobacterias patógenas. Los AGCC también señalizan a través de receptores acoplados a proteína G (GPR41 y GPR43), conectando la actividad microbiana con la regulación del apetito, la inmunidad y el metabolismo del animal [3]. Maximizar la producción cecal de AGCC —y de butirato en particular— se ha convertido así en un objetivo nutricional explícito.
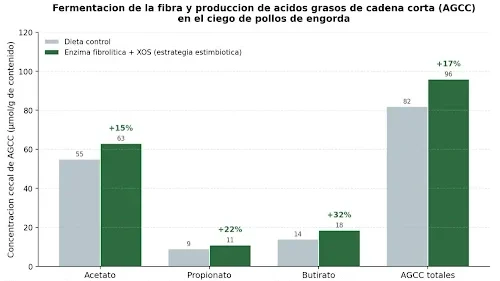
Figura 1. La estrategia que combina la degradación enzimática de los arabinoxilanos con la generación de oligosacáridos fermentables incrementa la producción cecal de AGCC, con un efecto especialmente marcado sobre el butirato. Valores representativos de los rangos reportados en la literatura citada [4,5].
Enzimas fibrolíticas: abrir la pared celular vegetal
La primera herramienta para transformar la fibra en un recurso es la enzima fibrolítica exógena. Las xilanasas, que hidrolizan los arabinoxilanos de la pared celular de los cereales, cumplen una doble función. Por un lado, reducen la viscosidad de la digesta y liberan nutrientes encapsulados —el clásico efecto de “desencajonamiento” o cell wall disruption— mejorando la digestibilidad de energía y aminoácidos. Por otro, y de forma más interesante, fragmentan los polímeros de xilano en cadenas más cortas [1].
Esta acción genera in situ pequeñas cantidades de xilooligosacáridos (XOS), oligómeros de xilosa con un potente carácter prebiótico. El meta-análisis y las revisiones publicadas en revistas de referencia, como World’s Poultry Science Journal, confirman que el uso de enzimas que degradan los PNA mejora de forma consistente el rendimiento productivo y la utilización de nutrientes en aves [1]. El valor de la xilanasa, por tanto, no se limita a corregir un antinutriente: empieza a sembrar el sustrato de la fermentación benéfica.
El concepto estimbiótico: estimular en lugar de aportar
Aquí surge una de las ideas más novedosas de la nutrición de monogástricos: el concepto de estimbiótico (stimbiotic). Un estimbiótico se define como un aditivo que estimula a la microbiota fibrolítica para aumentar la fermentabilidad de la fibra, aun cuando el propio aditivo aporte muy poca cantidad de sustrato a la producción de AGCC [4]. Dicho de otro modo: no se trata de alimentar a la bacteria con grandes cantidades de prebiótico, sino de encender la maquinaria fermentativa que ya posee el animal.
La combinación de una xilanasa con trazas de XOS fermentables encaja perfectamente en esta categoría. Los XOS generados actúan como una señal que activa y selecciona a las poblaciones bacterianas capaces de degradar fibra. La investigación reciente publicada en Poultry Science ha demostrado el mecanismo a nivel molecular: los prebióticos basados en XOS regulan al alza las proteínas del sistema Sus-like en los Bacteroidetes cecales, el aparato que las bacterias utilizan para captar y degradar polisacáridos complejos [5]. El resultado es una microbiota “entrenada” que fermenta con mayor eficiencia la fibra de toda la dieta.
Los efectos funcionales son medibles. Los estudios de suplementación estimbiótica reportan mayor producción total de gas y de ácidos grasos volátiles, incrementos en poblaciones de Lactobacillus spp., una elevación sostenida del butirato y el acetato cecales, y una mejora del índice de conversión alimenticia [4]. Es, en esencia, una estrategia que convierte la fibra de la ración en energía y en salud, en lugar de descartarla.
Nutrir el eje microbiota-epitelio: AGCC de aporte directo
La estrategia fibrolítica y estimbiótica busca que el animal produzca sus propios AGCC. Esta puede complementarse con un aporte exógeno y dirigido de estos mismos metabolitos, especialmente durante las fases tempranas de vida, cuando la microbiota aún no está plenamente establecida y la capacidad fermentativa es limitada.
Las fuentes protegidas de ácidos grasos de cadena corta y media —por ejemplo, en forma de monoglicéridos de ácidos butírico, propiónico, caprílico, cáprico y láurico— permiten liberar estos compuestos de manera gradual a lo largo del tracto digestivo. Así se nutre directamente al epitelio, se refuerza la barrera intestinal y se aporta un efecto antimicrobiano selectivo frente a patógenos gram-positivos y gram-negativos, sin recurrir a antibióticos promotores del crecimiento. Esta lógica de “alimentar al epitelio y modular la microbiota” es plenamente coherente con la tendencia global hacia producciones libres de antibióticos.
Una visión integral de la salud intestinal
La degradación de la fibra y la modulación del microbioma no operan de forma aislada, sino dentro de un programa integral de salud intestinal. Tres ejes se complementan. Primero, la liberación de nutrientes: además de las xilanasas, enzimas como las fitasas de última generación degradan el fitato y liberan fósforo, minerales y aminoácidos, mejorando la eficiencia global de la dieta y reduciendo la excreción. Segundo, la modulación microbiana mediante enzimas fibrolíticas, estimbióticos y fuentes de AGCC que orientan la fermentación hacia un perfil benéfico. Tercero, la protección frente a retos, que incluye el control de micotoxinas y biotoxinas mediante adsorbentes de alta afinidad, ya que un epitelio dañado por toxinas anula cualquier beneficio sobre el microbioma.
Estos principios son transversales a las distintas especies monogástricas. En porcicultura, las revisiones sobre xilanasas en dietas a base de maíz describen mecanismos análogos de fermentación de la fibra y de producción de AGCC en el intestino grueso, con beneficios sobre la integridad de la mucosa y la eficiencia [6]. El microbioma, como interfaz entre el alimento y el animal, responde a la misma lógica en aves y cerdos.
Consideraciones prácticas de aplicación
Trasladar estos conceptos a la granja exige precisión. El tipo de cereal base condiciona la respuesta: las dietas a base de trigo, cebada o centeno, ricas en PNA solubles, suelen mostrar respuestas más visibles a las xilanasas por el componente de viscosidad, mientras que en dietas a base de maíz —con PNA mayoritariamente insolubles— el beneficio se canaliza sobre todo por la vía estimbiótica y la fermentación de la fibra. La termoestabilidad de la enzima es otro factor crítico, ya que debe sobrevivir a las temperaturas de peletizado para conservar su actividad en el intestino.
El momento de aplicación también importa. Las primeras semanas de vida son determinantes: en ese período el microbioma se está estableciendo y “programando”, de modo que una intervención temprana con enzimas fibrolíticas, estimbióticos y aporte dirigido de AGCC sienta las bases de una capacidad fermentativa superior durante todo el ciclo. Por último, la consistencia de la materia prima y el control de micotoxinas son requisitos previos: ningún beneficio sobre el microbioma se sostiene sobre un epitelio comprometido por toxinas o por una dieta de calidad variable.
Conclusión
El cambio de paradigma es claro: la fibra dejó de ser un problema a minimizar para convertirse en una palanca productiva a gestionar. La clave está en intervenir el binomio fibra–microbioma con precisión —degradando la pared celular vegetal, estimulando a la microbiota fibrolítica y nutriendo al epitelio con ácidos grasos de cadena corta— para traducir un componente antes despreciado en energía, integridad intestinal y eficiencia. Para el productor de monogástricos, dominar la fermentación de la fibra ya no es una opción teórica, sino una de las fronteras más rentables de la nutrición moderna.
Soluciones nutricionales disponibles
El portafolio de soluciones para avicultura que integra enzimas fibrolíticas, tecnologías de modulación del microbioma y herramientas de salud intestinal puede consultarse en tryadd.mx/avicultura.
Referencias
[1] El uso de enzimas NSP en nutrición avícola: mitos y realidades. World’s Poultry Science Journal (Cambridge University Press).
[2] Jha, R.; Fouhse, J. M.; Tiwari, U. P.; Li, L.; Willing, B. P. (2019). Dietary Fiber and Intestinal Health of Monogastric Animals. Frontiers in Veterinary Science, 6:48.
[3] Microbial short-chain fatty acids: a bridge between dietary fibers and poultry gut health — A review (2022). Artículo de revisión sobre AGCC, fibra y salud intestinal en aves.
[4] González-Ortiz, G.; Bedford, M. R.; Bach Knudsen, K. E.; Courtin, C. M.; Classen, H. L. (eds.) (2019). The value of fibre: Engaging the second brain for animal nutrition. Wageningen Academic Publishers. (Definición del concepto estimbiótico).
[5] Morgan, N. K. et al. (2023). Xylo-oligosaccharide-based prebiotics upregulate the proteins of the Sus-like system in caecal Bacteroidetes of the chicken: evidence of stimbiotic mechanism. Poultry Science, 102(11).
[6] Petry, A. L.; Patience, J. F. (2020). Xylanase supplementation in corn-based swine diets: a review with emphasis on potential mechanisms of action. Journal of Animal Science, 98(11).
[7] Evaluation of xylanase and a fermentable xylo-oligosaccharide on performance and ileal digestibility of broiler chickens fed energy and amino acid deficient diets. Poultry Science (2021).
[8] Stimbiotic supplementation and xylose-rich carbohydrates modulate broiler’s capacity to ferment fibre. Poultry Science (2024).